

Questo articolo fa parte del dossier esperti «Le fasce».
Capitolo 6 — Centro di conoscenza Blue PortanceMeccanotrasduzione: in che modo una sollecitazione modifica il tessuto fasciale?
Sintesi — Le cellule non sono isolate dal loro ambiente meccanico. Una deformazione della matrice può essere trasmessa dalle integrine al citoscheletro, e poi modificare vie di segnalazione ed espressione genica. I fibroblasti regolano allora produzione, organizzazione e degradazione della matrice. Questo passaggio dalla meccanica alla biologia è appunto la meccanotrasduzione. Si tratta di un meccanismo centrale per comprendere come un tessuto si adatta — o si disadatta — al proprio ambiente meccanico nel corso del tempo.
1. Dalla matrice alla cellula
Le integrine collegano la matrice extracellulareMatrice extracellulareLa matrice extracellulare è la rete che circonda le cellule di un tessuto. Nelle fasce, associa fibre, soprattutto di collagene, a una sostanza fondamentale molto idratata, e conferisce al tessuto le sue proprietà meccaniche.Leggi la scheda completa : Matrice extracellulare al citoscheletro. Quando la matrice si deforma, i complessi di adesione, i canali meccanosensibili e la tensione del citoscheletro reagiscono. Insieme, possono modificare l’attività cellulare (Chiquet et al., 2009).
Questa catena di trasmissione non segue un’unica via sequenziale. Si basa piuttosto su più relè che funzionano in parallelo e interagiscono tra loro. Le integrine si raggruppano così a livello di zone di adesione focale. Lì si associano a un insieme di proteine, tra cui chinasi come FAK. Queste proteine collegano fisicamente la membrana cellulare alla rete di actina del citoscheletro e trasmettono simultaneamente segnali biochimici (Chiquet et al., 2009). Una deformazione della matrice modifica così la tensione esercitata su questa rete. Ciò può quindi aprire canali ionici sensibili allo stiramento e modificare localmente le concentrazioni di alcuni ioni, in particolare il calcio.
Parallelamente, la riorganizzazione dell’actina modifica essa stessa la tensione interna della cellula. Ciò può così attivare fattori di trascrizione sensibili alle forze meccaniche.
Fino al nucleo: il complesso LINC
Una parte di questi segnali si propaga anche fino al nucleo attraverso una via distinta. Il citoscheletro resta infatti fisicamente collegato all’involucro nucleare tramite un complesso proteico dedicato, il complesso LINC (nesprine e proteine SUN). Questo complesso permette così a una deformazione meccanica di influenzare direttamente l’organizzazione della cromatina. Modifica, in definitiva, l’espressione di alcuni geni (Crisp et al., 2006). Queste diverse vie sono numerose: adesioni focali, tensione citoscheletrica, canali meccanosensibili, fattori di trascrizione meccanosensibili, accoppiamento nucleo-citoscheletro. Esse convergono anziché succedersi in un ordine rigido. Ciò spiega quindi la robustezza e la rapidità della meccanotrasduzione cellulare (Ingber, 2003).
Una catena convergente che prepara l’interfaccia neurosensoriale
Questa continuità fisica, dalla matrice fino al nucleo, spiega perché si parla di meccanotrasduzione. Non si tratta di una semplice risposta chimica a un segnale esterno. Questi meccanismi, descritti in numerosi tipi cellulari, mostrano così che le cellule dei tessuti connettivi possono rilevare le proprietà meccaniche del loro ambiente. Possono inoltre modificare di conseguenza la propria attività. Permettono così di comprendere la fascia come un tessuto biologicamente reattivo, senza attribuirle una capacità autonoma di elaborazione dell’informazione. Questa lettura generale della fascia come tessuto attivo è anche quella sintetizzata da Lesondak (Lesondak, 2019). Questa rilettura della fascia come tessuto biologicamente reattivo, anziché come semplice involucro anatomico, prepara così il capitolo successivo. Quest’ultimo è dedicato al suo ruolo di interfaccia neurosensoriale.

2. Il fibroblasto come organizzatore della matrice
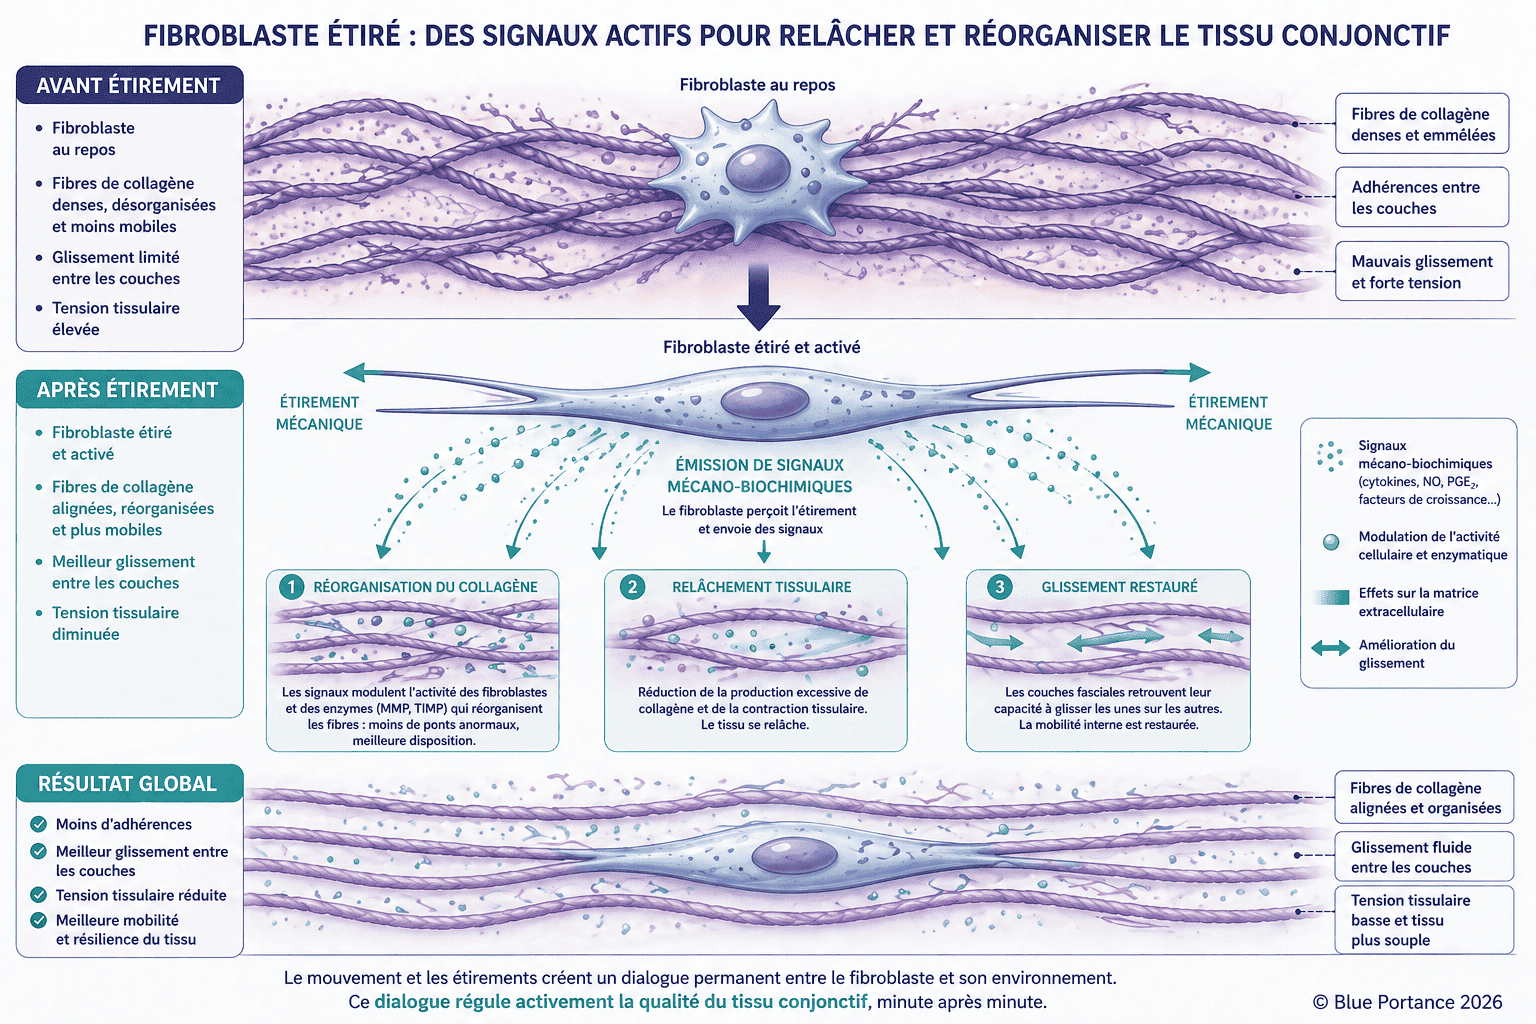
Il fibroblasto sintetizza collagene, proteoglicani ed enzimi di rimodellamento. Nel topo, lo stiramento del tessuto sottocutaneo può modificare la forma del fibroblasto in pochi minuti. Questa risposta morfologica è infatti molto più rapida di quella attesa da una sintesi di nuove proteine (Langevin et al., 2005).
Osservazioni dirette sono state effettuate ex vivo e in vivo su tessuto sottocutaneo di topo stirato per durate comprese tra dieci minuti e due ore. Hanno mostrato che il citoscheletro dei fibroblasti si riorganizza rapidamente in risposta allo stiramento. Questa riorganizzazione si accompagna a un aumento misurabile del perimetro e della superficie delle cellule (Langevin et al., 2005). Questo studio documenta un modello murino e una risposta morfologica cellulare. Non misura tuttavia direttamente una nuova produzione di collagene né un rimodellamento matriciale duraturo. Non dimostra quindi né un adattamento fasciale umano, né l’effetto clinico di una mobilizzazione.
Questa constatazione suggerisce comunque che i fibroblasti non si limitano a fabbricare passivamente la matrice: rispondono attivamente al suo stato meccanico. Questa risposta citoscheletrica rapida precede così, nel tempo, la regolazione più lenta della loro attività di sintesi.
Una doppia capacità, rapida e lenta
Questa doppia capacità — reazione rapida di forma e reazione lenta di sintesi — permette così al fibroblasto di svolgere un ruolo di organizzatore continuo della matrice. Non si tratta quindi di un semplice fabbricante occasionale. In numerosi tessuti connettivi, regola così la quantità di collagene prodotta e il tipo di collagene sintetizzato. Regola inoltre l’attività degli enzimi che degradano la matrice vecchia (le metalloproteinasi della matrice), nonché quella dei loro inibitori. Questa regolazione dell’espressione dei geni matriciali è documentata dalla revisione di Chiquet e collaboratori (Chiquet et al., 2009).
Questo lavoro di equilibrio si svolge in modo continuo, anche in assenza di qualsiasi patologia o di qualsiasi evento particolare. Le condizioni meccaniche partecipano alla regolazione di questo equilibrio. Il loro effetto dipende tuttavia dal tipo cellulare, dal tessuto e dalle caratteristiche del carico — intensità, durata, frequenza, modalità. Dipende inoltre dal contesto biochimico locale, in particolare dalla presenza di fattori di crescita o di segnali infiammatori. Una stessa deformazione non produce quindi necessariamente la stessa risposta in tutte le fasce né in tutti i soggetti.
Un’eterogeneità tra fibroblasti
Questa variabilità dipende in gran parte dall’eterogeneità dei fibroblasti stessi. Lungi dal costituire una popolazione cellulare uniforme, i fibroblasti differiscono secondo la loro origine embrionale, il tessuto e la regione anatomica in cui risiedono. Conservano così differenze funzionali durature anche in coltura (Plikus et al., 2021). Un fibroblasto della fascia superficiale, un fibroblasto tendineo e un fibroblasto di una fascia profonda non hanno quindi necessariamente la stessa sensibilità meccanica. Non hanno nemmeno la stessa velocità di rinnovamento matriciale, né la stessa soglia di passaggio verso un fenotipo miofibroblastico. Questa eterogeneità, ancora non completamente mappata per i diversi tessuti del sistema fasciale, invita così alla prudenza. Un risultato ottenuto in un tessuto o in una specie non deve quindi essere esteso all’insieme delle fasce umane.
3. Due temporalità da non confondere
Lo spostamento di un fluido o lo scorrimento di uno strato è immediato. Una modifica duratura dell’organizzazione fibrosa richiede un’attività cellulare, una sintesi e un rimodellamento che si svolgono nell’arco di giorni, settimane o più.
Questa distinzione si ricollega a quella stabilita nel capitolo 2 tra risposta meccanica immediata — creep, rilassamento, isteresi — e adattamento biologico differito. Un tessuto connettivo sollecitato regolarmente in modo progressivo può così evolvere nell’arco di settimane o mesi. Il suo contenuto di collagene, l’orientamento delle sue fibre e la sua rigidità globale possono risultarne modificati. Questo adattamento è particolarmente documentato nell’uomo nei tendini e nelle aponeurosi. Il carico meccanicoCarico meccanicoIl carico meccanico designa l’insieme delle forze applicate al corpo o a un tessuto. Si descrive attraverso diverse variabili: intensità, direzione, zona di applicazione, durata, frequenza, velocità di messa in carico e recupero tra le esposizioni.Leggi la scheda completa : Carico meccanico vi modifica infatti la sintesi di collagene e le proprietà meccaniche del tessuto (Magnusson et al., 2008). Fornisce così un modello utile per comprendere il rimodellamento dei tessuti connettivi sottoposti a carico.
Questo modello non permette tuttavia di attribuire automaticamente gli stessi tempi né la stessa ampiezza di risposta all’insieme delle componenti del sistema fasciale. La loro eterogeneità cellulare è stata d’altronde appena sottolineata.
Un modello che non si applica in modo uniforme
Gli effetti di una riduzione della sollecitazione non sono d’altronde uniformi a seconda del tessuto. Un’immobilizzazione di breve durata può così ridurre nettamente la massa e la forza muscolari. Non modifica tuttavia in modo misurabile il rinnovamento del collagene tendineo nello stesso periodo. Ciò illustra che muscolo e tessuto connettivo denso non rispondono alla stessa velocità a una stessa sollecitazione (Christensen et al., 2008). Confondere le scale temporali porta ad aspettative irrealistiche: una deformazione meccanica o una segnalazione cellulare possono essere innescate in pochi minuti. Una trasformazione strutturale duratura della matrice richiede invece la ripetizione dello stimolo. Necessita inoltre di un tempo di rinnovamento sufficiente, dell’ordine di diverse settimane o diversi mesi.
Non confondere la velocità del segnale con quella del rimodellamento
È questa ripetizione coerente di uno stimolo che condiziona un rimodellamento biologico osservabile. Questo principio vale così sia per un adattamento favorevole a un allenamento progressivo sia per un disadattamento legato a una sedentarietà prolungata. Questa scala temporale invita a ridimensionare i cambiamenti percepiti sul momento. Una sensazione di rigidità o di elasticità avvertita in pochi minuti riflette infatti soprattutto la meccanica immediata descritta sopra, non un rimodellamento biologico già compiuto.

4. Adattamento o disadattamento
In alcuni tessuti connettivi, un carico progressivo può modificare la sintesi, l’organizzazione e le proprietà meccaniche della matrice. Questo rimodellamento avviene allora nella direzione delle sollecitazioni ripetute. Un carico eccessivo, prolungato o associato a un’infiammazione può favorire miofibroblasti, deposito di collagene e irrigidimento. La meccanotrasduzione non è quindi né buona né cattiva in sé.
Questa biforcazione tra due esiti opposti si basa su uno stesso meccanismo cellulare di base. È uno dei punti più importanti da ricordare di questo capitolo. La direzione che prende questa risposta cellulare dipende da più fattori congiunti. Tra questi figurano l’intensità del carico rispetto alle capacità attuali del tessuto, la sua frequenza e la sua ripetizione, nonché la presenza o meno di periodi di recupero sufficienti. Conta anche il contesto biologico locale — in particolare l’esistenza o meno di un’infiammazione associata.
Una stessa cellula può così rispondere in modo adattativo a un carico progressivo e moderato, partecipando al mantenimento di una matrice organizzata lungo le abituali linee di forza. Ciò non garantisce tuttavia, da solo, l’assenza di dolore o il ripristino di una funzione. Può anche rispondere in modo disadattativo a un carico troppo intenso, troppo sostenuto o sovrapposto a un contesto infiammatorio.
Che cosa determina la direzione del cambiamento
In questo secondo caso, la tensione matriciale interagisce con segnali biochimici, primo fra tutti il TGF-β. Questo accoppiamento favorisce così la differenziazione dei fibroblasti in miofibroblasti contrattili. Questa meccanoregolazione congiunta della tensione e dei fattori di crescita è infatti ben documentata. La letteratura sulla cicatrizzazione e sulla fibrosi lo conferma (Tomasek et al., 2002). È questo possibile cambiamento, in un senso o nell’altro, che collega direttamente la meccanotrasduzione cellulare ai processi di fibrosi sviluppati nel capitolo 9.
Il miofibroblasto, attore centrale dell’ambivalenza
Il miofibroblastoMiofibroblastoIl miofibroblasto è una cellula del tessuto connettivo, derivata il più delle volte da un fibroblasto, che acquisisce una capacità di contrazione. Aiuta a chiudere le ferite ma, se persiste, può contribuire alla fibrosi.Leggi la scheda completa : Miofibroblasto illustra bene questa ambivalenza. Normalmente assente o raro in numerosi tessuti adulti non lesionati, compare transitoriamente durante la riparazione, dove la sua capacità contrattile aiuta a chiudere una ferita. Alcune popolazioni contrattili affini esistono peraltro in sedi specializzate. Se tuttavia persiste in modo anomalo e prolungato nel tessuto, questa stessa capacità contrattile cambia ruolo. Associata a un deposito eccessivo e a un rimodellamento anomalo della matrice, può allora contribuire a un irrigidimento patologico (Tomasek et al., 2002).

5. Un circolo meccanico e biologico
La matrice influenza la cellula, che a sua volta modifica la matrice. Un aumento di rigidità può rafforzare alcune tensioni cellulari e mantenere il rimodellamento. Questo circolo sarà ripreso nel capitolo sulla fibrosi.
Questo circolo ha una proprietà importante: può autoalimentarsi. Un aumento della rigidità matriciale può modificare le forze sviluppate a livello delle adesioni focali. Può così favorire, in alcuni contesti, il mantenimento di un fenotipo miofibroblastico. Le cellule rilevano allora questa rigidità in particolare tramite i fattori di trascrizione meccanosensibili YAP e TAZ. La localizzazione nucleare di questi ultimi aumenta infatti su un substrato rigido (Dupont et al., 2011).
Questo accoppiamento tra irrigidimento e attivazione cellulare è ben documentato in determinati modelli tissutali fibrotici. L’accumulo di matrice vi mantiene infatti a sua volta la rigidità e la differenziazione miofibroblastica. Questo meccanismo spiega in parte tale fenomeno. Alcuni rimodellamenti tissutali tendono così a proseguire oltre lo stimolo iniziale che li ha innescati (Huang et al., 2012). Al contrario, un carico meccanico compatibile con le capacità del tessuto può partecipare al mantenimento del suo rinnovamento. Può inoltre, in alcuni tessuti, favorire l’adattamento delle sue proprietà meccaniche.
Una traiettoria adattativa meno ben caratterizzata
Non si tratta tuttavia del semplice inverso del circolo fibrotico. Questa traiettoria è infatti caratterizzata in modo nettamente meno preciso nella letteratura. Le vie cellulari, i tempi e gli effetti dipendono peraltro fortemente dal tessuto studiato. Questa asimmetria tra un circolo patologico ben descritto e un circolo adattativo più difficile da circoscrivere è essa stessa un punto importante. Ricorda così che la biologia non funziona necessariamente secondo due traiettorie perfettamente simmetriche. La meccanotrasduzione resta centrale nella comprensione dei tessuti fasciali proprio perché il suo esito non è mai scontato in anticipo.

Da ricordare
- La meccanotrasduzione converte un segnale meccanico in una risposta cellulare.
- I fibroblasti modificano la matrice in funzione del contesto.
- Effetti meccanici immediati e rimodellamento biologico differito sono distinti.
- Una stessa via può sostenere l’adattamento o contribuire alla fibrosi.
Domande frequenti
Un movimento rimodella immediatamente la fascia?
I fibroblasti percepiscono la rigidità?
La meccanotrasduzione prova l’efficacia di un trattamento?
Un carico maggiore produce un adattamento maggiore?
Riferimenti scientifici
Riferimenti citati (1/2)
- Chiquet M, Gelman L, Lutz R, Maier S. From mechanotransduction to extracellular matrix gene expression. Biochim Biophys Acta. 2009;1793:911–920.
- Christensen B, Dyrberg E, Aagaard P, Kjaer M, Langberg H. Short-term immobilization and recovery affect skeletal muscle but not collagen tissue turnover in humans. J Appl Physiol. 2008;105(6):1845–1851.
- Crisp M, Liu Q, Roux K, et al. Coupling of the nucleus and cytoplasm: role of the LINC complex. J Cell Biol. 2006;172(1):41–53.
- Dupont S, Morsut L, Aragona M, et al. Role of YAP/TAZ in mechanotransduction. Nature. 2011;474(7350):179–183.
- Huang X, Yang N, Fiore VF, et al. Matrix stiffness-induced myofibroblast differentiation is mediated by intrinsic mechanotransduction. Am J Respir Cell Mol Biol. 2012;47(3):340–348.
Riferimenti citati (2/2)
- Ingber DE. Tensegrity I. Cell structure and hierarchical systems biology. J Cell Sci. 2003;116:1157–1173.
- Langevin HM, Bouffard NA, Badger GJ, Iatridis JC, Howe AK. Dynamic fibroblast cytoskeletal response to subcutaneous tissue stretch ex vivo and in vivo. Am J Physiol Cell Physiol. 2005;288(3):C747–C756.
- Magnusson SP, Narici MV, Maganaris CN, Kjaer M. Human tendon behaviour and adaptation, in vivo. J Physiol. 2008;586(1):71–81.
- Plikus MV, Wang X, Sinha S, et al. Fibroblasts: origins, definitions, and functions in health and disease. Cell. 2021;184(15):3852–3872.
- Tomasek JJ, Gabbiani G, Hinz B, Chaponnier C, Brown RA. Myofibroblasts and mechano-regulation of connective tissue remodelling. Nat Rev Mol Cell Biol. 2002;3:349–363.
- Lesondak D. Le Fascia. Éditions Ressources Primordiales; 2019.
← Capitolo precedente: Perché le fasce hanno bisogno di micromovimenti?
Torna al dossier Fasce
Capitolo successivo: Le fasce sono un’interfaccia neurosensoriale? →
Nota: questo contenuto spiega meccanismi generali. Non costituisce né una diagnosi medica né una raccomandazione terapeutica.
© Gil Ayache. I concetti originali, i modelli biomeccanici, gli schemi, la terminologia, le rappresentazioni grafiche, le figure fondanti, i testi originali e i principi presentati in questa pagina costituiscono opere protette dal diritto d’autore. Sono messi a disposizione di Blue Portance nell’ambito di una convenzione di messa a disposizione di proprietà intellettuale, senza trasferimento dei diritti patrimoniali né della qualità di autore.


