


1. De la force à la réponse cellulaire
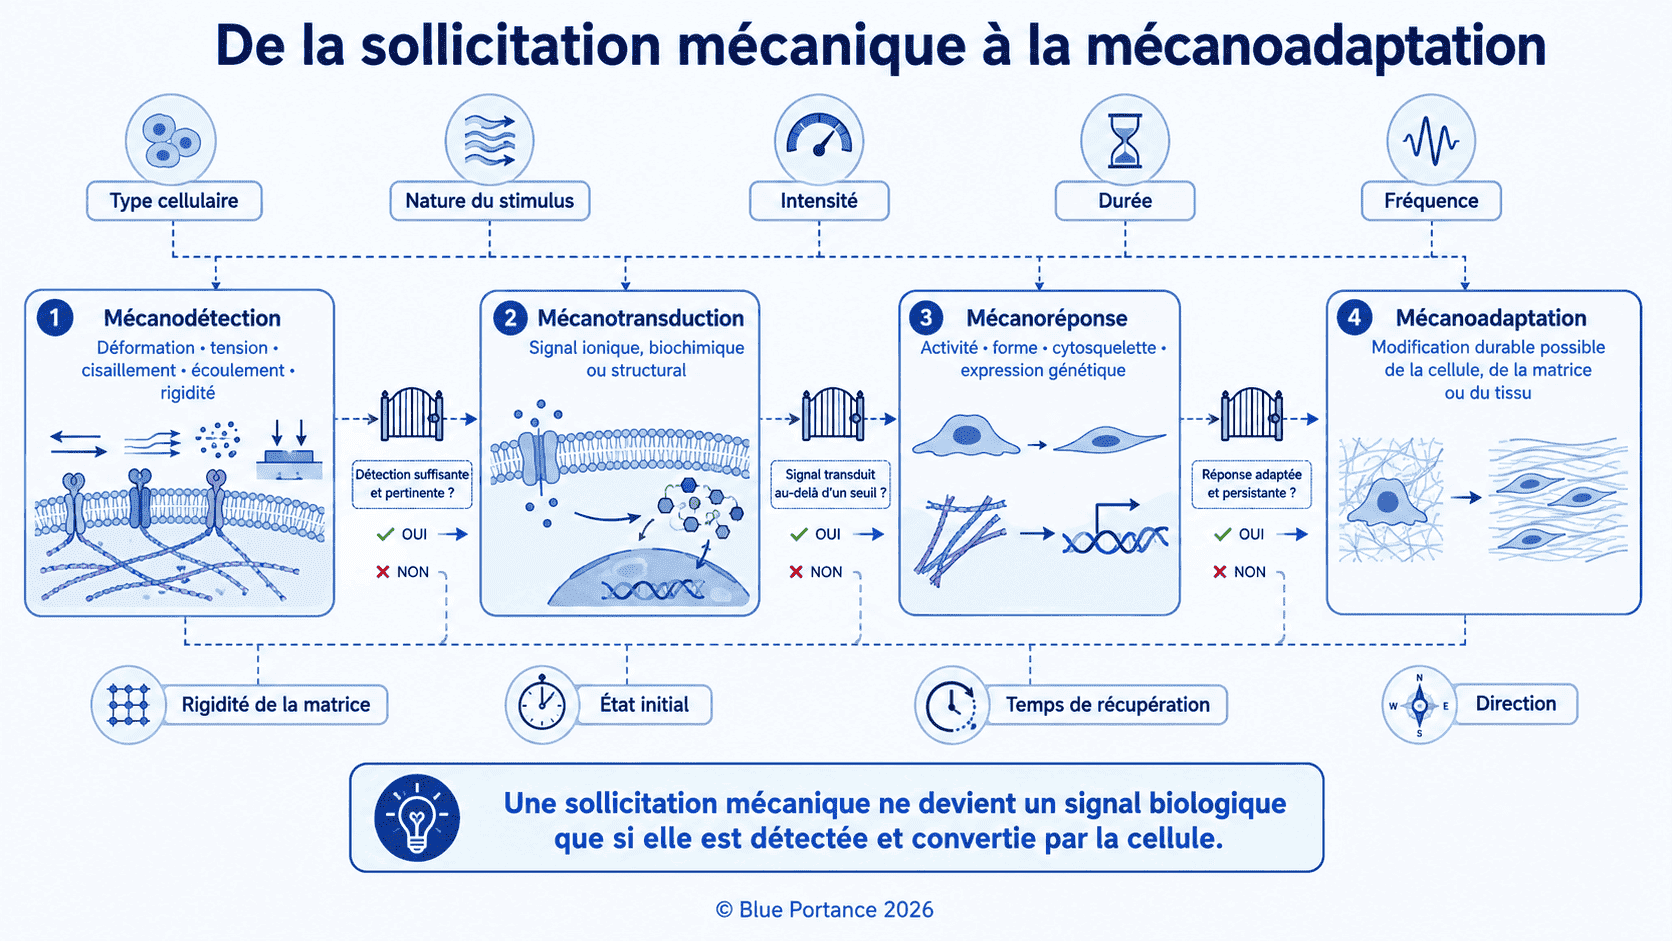
Il faut avant tout distinguer plusieurs étapes :
- force appliquée à la cellule ou à son environnement ;
- déformation de la cellule ou de la matrice ;
- détection de cette déformation par une structure mécanosensible ;
- déclenchement d’un signal intracellulaire ;
- modification de l’activité de la cellule ;
- influence possible sur le tissu dans son ensemble.
La force mécanique constitue donc le stimulus initial, mais elle n’est pas encore le signal biologique. Le signal apparaît lorsque la cellule transforme cette contrainte en une modification moléculaire ou électrique.
La mécanotransduction est ainsi une forme de conversion entre deux niveaux :
- niveau mécanique : force, tension, compression, cisaillement ou rigidité ;
- niveau biologique : ouverture d’un canal, activation d’une enzyme, modification du cytosquelette, expression génétique ou remodelage matriciel.
Pour cela, les cellules et les tissus disposent de plusieurs mécanismes pour détecter et interpréter ces forces (Wang & Thampatty, 2006 ; Humphrey et al., 2014).
2. Les structures qui détectent les contraintes
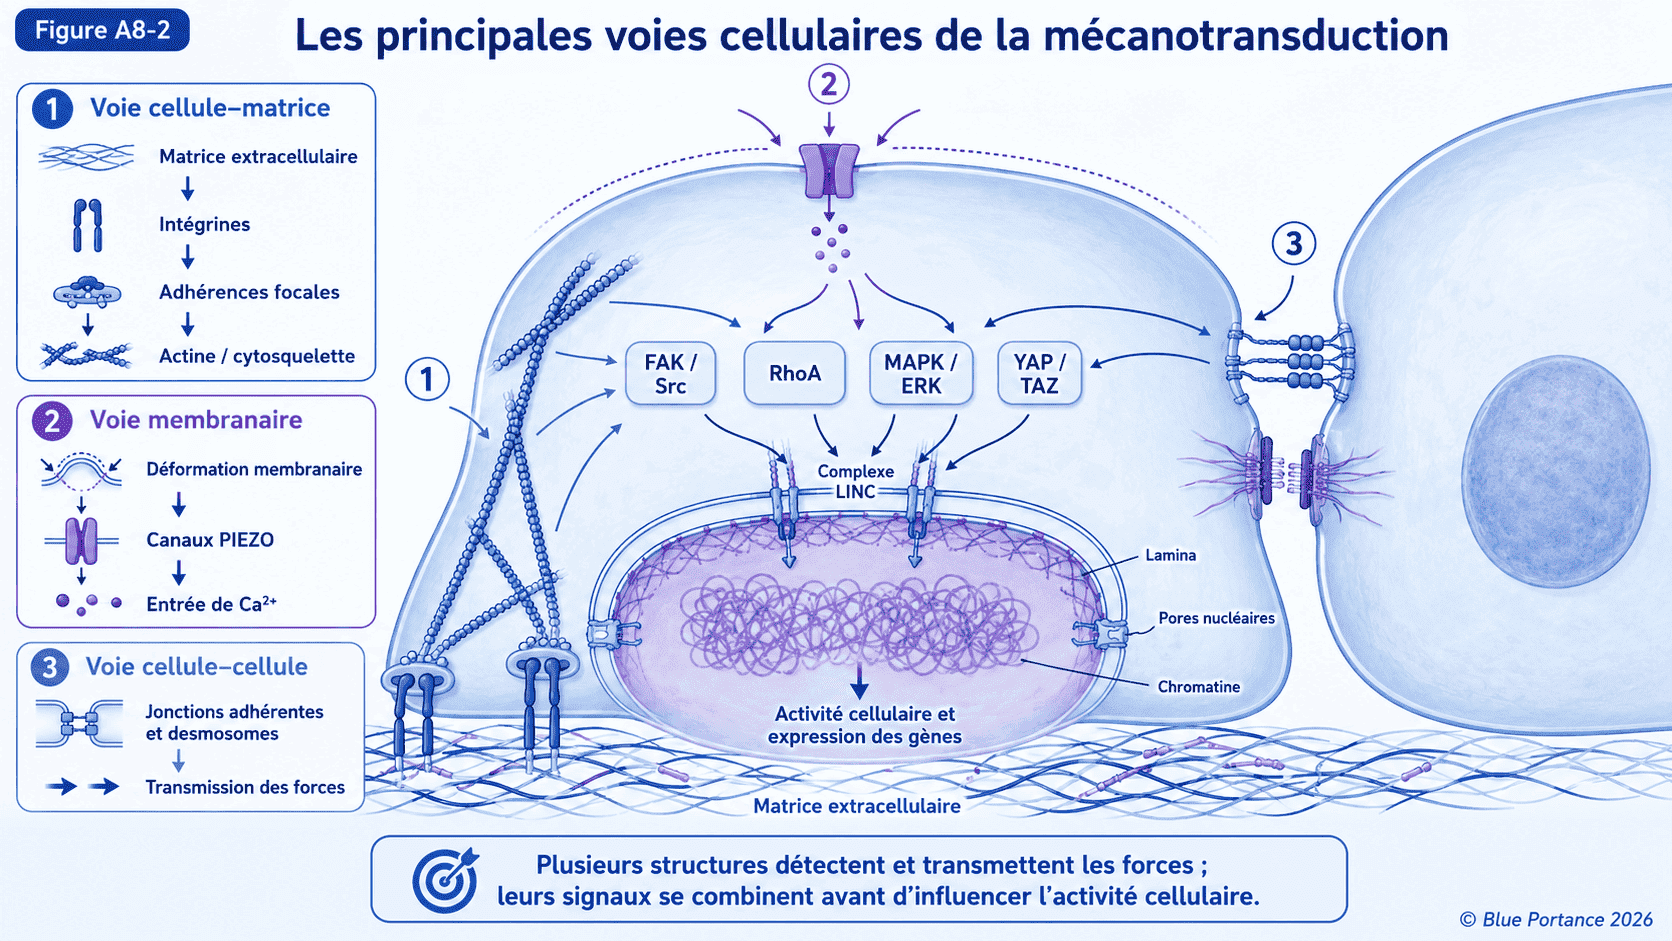
La cellule ne possède pas un récepteur mécanique unique. Plusieurs structures peuvent au contraire participer à la détection :
- intégrines ;
- adhérences focales ;
- jonctions entre cellules ;
- canaux ioniques mécanosensibles ;
- cytosquelette ;
- enveloppe nucléaire ;
- chromatine.
Le type de structure mobilisé dépend notamment de la manière dont la force est appliquée et de la fonction de la cellule.
Par exemple, une cellule adhérente à une matrice rigide ne reçoit pas les mêmes signaux mécaniques qu’une cellule située dans une matrice souple, ou dans un environnement soumis à un écoulement. Les forces peuvent également être transmises par les cellules voisines ou par les contacts entre les cellules.
La mécanotransduction doit donc être comprise comme un réseau de détection et de transmission, plutôt que comme une chaîne linéaire comprenant un seul capteur.
3. Les intégrines et les adhérences focales
Les intégrines sont des protéines transmembranaires qui relient la matrice extracellulaire au cytosquelette de la cellule.
Elles établissent ainsi une continuité mécanique entre :
- fibres et macromolécules de la matrice ;
- membrane cellulaire ;
- protéines des adhérences focales ;
- filaments d’actine ;
- cytosquelette ;
- intérieur de la cellule.
Lorsqu’une force est exercée sur la matrice ou sur la cellule, les intégrines peuvent transmettre cette force aux structures intracellulaires. Elles participent également à l’activation de protéines de signalisation, notamment au niveau des adhérences focales (Ross et al., 2013).
Les adhérences focales ne sont donc pas de simples points d’ancrage. Elles constituent plutôt des plateformes mécanochimiques, dans lesquelles une force peut modifier la conformation de protéines, l’organisation du cytosquelette et l’activité de voies de signalisation.
Une contrainte exercée sur la matrice peut ainsi modifier :
- tension des filaments d’actine ;
- forme de la cellule ;
- stabilité des adhérences ;
- migration ;
- prolifération ;
- production de matrice extracellulaire.
Une mécanodétection active
Cependant, la mécanodétection n’est pas purement passive. Par sa contractilité, la cellule exerce elle-même une traction sur la matrice, par l’intermédiaire de l’actomyosine. Elle reçoit alors en retour une résistance qui dépend de l’organisation et de la rigidité de cette matrice. Cette résistance participe notamment à la maturation des adhérences, à la tension du cytosquelette et à certaines voies de signalisation. La cellule ne subit donc pas seulement les forces : elle sonde aussi mécaniquement son environnement.
4. Le cytosquelette comme réseau de transmission
Le cytosquelette comprend notamment :
- filaments d’actine ;
- microtubules ;
- filaments intermédiaires.
Il donne à la cellule une organisation mécanique et participe également au transport de forces entre la membrane, les adhérences et le noyau.
Le cytosquelette n’est pourtant pas une structure rigide. Il se réorganise selon les charges reçues, les tensions et les signaux chimiques. En outre, une modification de sa tension peut influencer la forme cellulaire et l’activité de nombreuses protéines.
Le cytosquelette agit donc à la fois comme :
- système de transmission ;
- élément de résistance ;
- régulateur de la forme cellulaire ;
- relais entre la membrane et le noyau.
Les cellules peuvent ainsi répondre à la rigidité de leur environnement en modifiant leur cytosquelette et leur adhérence. Les propriétés mécaniques de la matrice deviennent alors des informations biologiques susceptibles d’influencer le comportement cellulaire (Humphrey et al., 2014).
5. Les canaux ioniques mécanosensibles
Certaines protéines membranaires peuvent par ailleurs répondre à une tension ou à une déformation de la membrane. Il s’agit notamment de canaux ioniques mécanosensibles.
Lorsqu’ils s’ouvrent, ils permettent le passage d’ions, comme le calcium, le sodium ou le potassium. Cette modification rapide de la composition électrique et ionique de la cellule peut alors déclencher :
- modification du potentiel membranaire ;
- activation enzymatique ;
- réorganisation du cytosquelette ;
- libération de molécules de signalisation ;
- modification de l’expression de certains gènes.
Parmi les canaux mécanosensibles, PIEZO1 et PIEZO2 constituent notamment des exemples majeurs. Leur ouverture sous l’effet de contraintes transmises à la membrane permet une entrée de cations, notamment de calcium. Elle assure ainsi une conversion rapide du stimulus mécanique en signal électrochimique. Leurs fonctions diffèrent toutefois selon les cellules et les tissus. Leur présence ne permet donc pas de prédire une réponse uniforme à toute déformation (Xiao, 2024).
Les canaux mécanosensibles constituent donc une voie de conversion particulièrement rapide entre une déformation physique et une réponse cellulaire. Ils interviennent dans de nombreux tissus, mais leur rôle précis dépend du type cellulaire, de la localisation du canal et de l’intensité de la stimulation.
Il faut cependant éviter d’affirmer que toute pression exercée sur un tissu ouvre automatiquement ces canaux. La réponse dépend de la déformation effectivement transmise à la membrane et des propriétés propres à la cellule.
6. Les jonctions entre cellules
Les forces ne s’exercent toutefois pas uniquement entre une cellule et la matrice. Elles peuvent également être transmises entre cellules voisines.
Les jonctions adhérentes et les desmosomes relient en effet les cellules entre elles et participent à la continuité mécanique des tissus. Une traction exercée sur une cellule peut donc être transmise à ses voisines.
Cette transmission permet d’abord au tissu de se comporter comme une organisation coordonnée. Elle peut également modifier les signaux intracellulaires dans plusieurs cellules simultanément.
Les jonctions cellulaires participent ainsi à plusieurs fonctions :
- répartition des contraintes ;
- cohésion du tissu ;
- coordination des réponses ;
- transmission de signaux mécaniques ;
- adaptation collective des cellules.
Les mécanismes de mécanotransduction peuvent donc être individuels, mais aussi organisés à l’échelle d’un tissu.
7. Le noyau comme intégrateur mécanique
Le noyau ne constitue pas un simple réservoir d’ADN isolé du reste de la cellule. Il est en effet relié mécaniquement au cytosquelette par le complexe LINC (Linker of Nucleoskeleton and Cytoskeleton).
Ce complexe relie notamment :
- filaments du cytosquelette ;
- protéines nesprines ;
- protéines SUN ;
- lamina nucléaire ;
- enveloppe du noyau.
Une force appliquée à la matrice peut donc être transmise jusqu’au noyau, par une continuité physique entre l’environnement extracellulaire et le nucléoplasme (Kirby & Lammerding, 2018).
La déformation de l’enveloppe nucléaire peut alors modifier :
- forme du noyau ;
- tension de la membrane nucléaire ;
- organisation de la lamina ;
- fonctionnement des pores nucléaires ;
- disposition de la chromatine.
Le noyau peut ainsi agir comme un intégrateur mécanique. Il ne détecte cependant pas la force de manière consciente : il transforme les déformations reçues en modifications de sa structure et de son fonctionnement.
8. Des structures mécanosensibles aux voies de signalisation
Entre la détection mécanique et l’expression des gènes, plusieurs voies biochimiques interviennent. Elles relient ainsi les structures mécanosensibles aux régulateurs qui modifient l’activité cellulaire.
Dans les adhérences focales, par exemple, une contrainte peut activer les kinases FAK et Src. Cette activation contribue ensuite au recrutement de protéines de signalisation et à la maturation des adhérences.
De même, la petite GTPase RhoA régule la contractilité actomyosine et la tension du cytosquelette. Son activation peut ainsi renforcer les adhérences et modifier la forme de la cellule.
L’entrée de calcium, notamment par les canaux PIEZO, peut activer des enzymes calcium-dépendantes. Elle contribue ainsi à plusieurs de ces voies.
Les voies MAPK/ERK peuvent également être sollicitées par une contrainte mécanique. Elles participent notamment à la régulation de la prolifération et de l’activité génique.
YAP et TAZ, des relais transcriptionnels
Parmi les régulateurs sensibles à ces signaux, YAP et TAZ occupent enfin une place particulière. Ces coactivateurs transcriptionnels répondent notamment à la rigidité de la matrice, à la forme de la cellule et à la tension du cytosquelette. Selon leur localisation nucléaire ou cytoplasmique, ils peuvent moduler l’expression de gènes impliqués dans la prolifération, la différenciation et le remodelage matriciel (Panciera et al., 2017).
Ces voies ne fonctionnent toutefois pas de manière isolée. Au contraire, elles interagissent entre elles et convergent partiellement vers des régulateurs communs. Cela explique pourquoi une même contrainte peut produire des effets cellulaires variés selon le contexte.
9. Des forces mécaniques à l’expression des gènes
La déformation du noyau peut d’abord influencer les échanges entre le cytoplasme et le nucléoplasme. Elle peut également modifier l’organisation de la chromatine et l’accessibilité de certaines régions du génome.
Une force peut ainsi influencer l’expression génétique par plusieurs voies qui s’entrecroisent :
- transmission physique jusqu’au noyau, via le cytosquelette et le complexe LINC ;
- activation de voies biochimiques, comme FAK/Src, RhoA ou MAPK/ERK ;
- entrée ionique, notamment par les canaux PIEZO ;
- translocation de régulateurs transcriptionnels, comme YAP et TAZ.
La déformation directe du noyau représente donc une voie de mécanotransduction parmi d’autres, et non la voie unique conduisant à l’expression des gènes.
Les conséquences de ces voies combinées peuvent alors concerner :
- production de protéines ;
- synthèse de matrice extracellulaire ;
- métabolisme ;
- prolifération ;
- différenciation ;
- réparation ;
- réponse inflammatoire.
Les recherches récentes présentent en outre le noyau comme un élément actif de la mécanoadaptation cellulaire, et non comme le simple dernier maillon d’une chaîne de transmission (Echarri, 2022 ; Uhler & Shivashankar, 2017).
10. Une réponse dépendante de l’intensité et de la durée
La réponse cellulaire dépend également de la dose mécanique.
Une force brève et modérée peut par exemple provoquer une réponse transitoire. Une force répétée ou prolongée peut, en revanche, entraîner un remodelage plus durable.
Les paramètres importants sont notamment :
- intensité ;
- durée ;
- fréquence ;
- vitesse d’application ;
- direction ;
- répétition ;
- rigidité de l’environnement ;
- état initial de la cellule.
Une cellule peut également s’adapter progressivement à une stimulation répétée. Cette adaptation ne signifie cependant pas nécessairement que le signal disparaît. Elle peut en effet correspondre à une modification du seuil de réponse, ou à une réorganisation des structures mécanosensibles.
La dose mécanique ne se réduit toutefois pas à l’intensité et à la durée. Le temps de récupération entre deux sollicitations compte également, de même que le caractère continu ou intermittent de la charge. La variabilité spatiale et directionnelle des contraintes, ainsi que l’état de précontrainte du tissu et les antécédents mécaniques de la cellule, peuvent aussi modifier la réponse.
Une même charge moyenne peut ainsi produire des environnements biologiques différents, selon qu’elle reste constante ou qu’elle alterne avec des phases de moindre charge. Il faut toutefois éviter d’affirmer que cette intermittence entraîne nécessairement une adaptation bénéfique.
Une contrainte excessive
À l’inverse, une contrainte excessive peut provoquer une réponse défavorable :
- altération du cytosquelette ;
- rupture des adhérences ;
- perturbation de l’enveloppe nucléaire ;
- inflammation ;
- apoptose ;
- remodelage matriciel anormal.
Il faut donc éviter de qualifier une contrainte de bénéfique ou de nocive indépendamment de sa dose et du contexte biologique.
11. De la mécanotransduction à l’adaptation tissulaire
La réponse d’une cellule peut également avoir des conséquences sur le tissu.
Une cellule sollicitée mécaniquement peut par exemple modifier :
- production de collagène ;
- synthèse de glycosaminoglycanes ;
- libération de facteurs de croissance ;
- organisation de la matrice ;
- adhérence aux cellules voisines ;
- activité métabolique.
Lorsque plusieurs cellules répondent de manière coordonnée, la matrice et la structure du tissu peuvent être progressivement remodelées.
Une boucle, plutôt qu’une chaîne
Cette relation ne va toutefois pas dans un seul sens. Les propriétés de la matrice orientent la réponse mécanique de la cellule. Cette réponse modifie ensuite en retour la production et l’organisation de la matrice, ce qui modifie à son tour les propriétés auxquelles la cellule est exposée. La cellule et la matrice s’inscrivent ainsi dans une boucle, plutôt que dans une simple chaîne de conséquences.
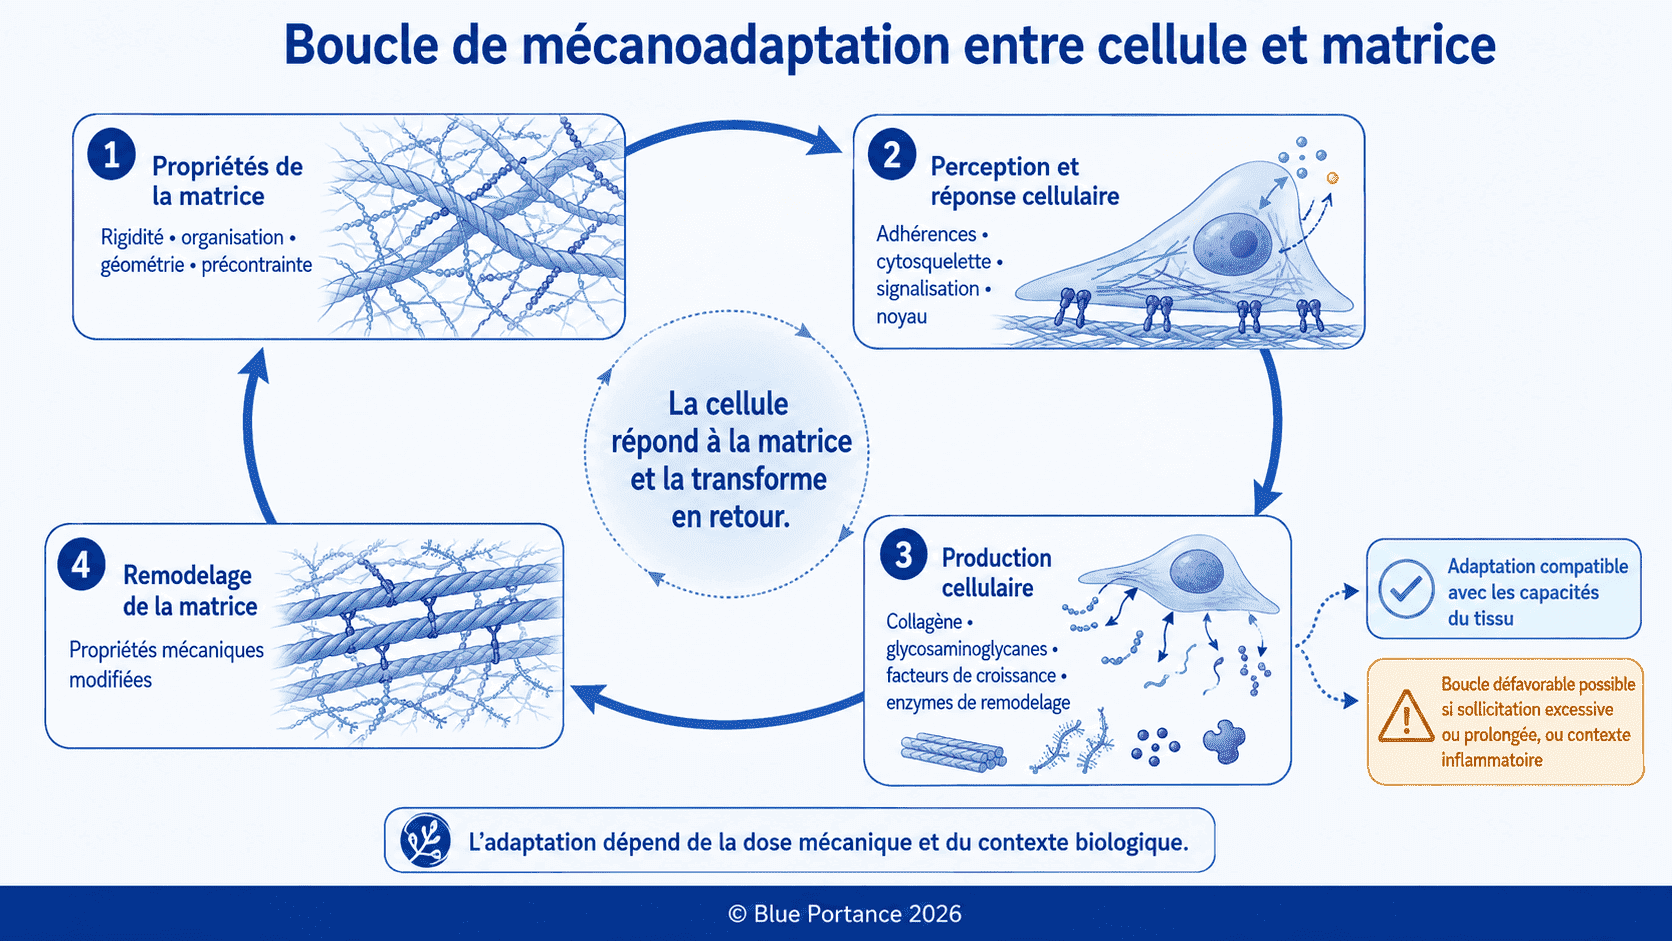
Cette adaptation peut être fonctionnelle lorsque la contrainte reste compatible avec les capacités du tissu. Elle peut devenir défavorable lorsque la charge est excessive, répétée ou associée à une inflammation. Ce type de boucle anormale est également évoqué dans certains processus de fibrose.
La mécanotransduction fournit donc un lien entre :
- forces macroscopiques ;
- déformation des tissus ;
- réponses cellulaires ;
- remodelage biologique.
Elle ne permet cependant pas de déduire directement un bénéfice clinique à partir d’un mécanisme cellulaire isolé.
12. Ce que cela change pour la position assise
En position assise, les tissus sont soumis à des compressions, des déformations et parfois des cisaillements. Ces sollicitations peuvent ainsi modifier la forme des cellules, la tension de la matrice et les relations entre les tissus.
Une surface d’appui peut donc constituer un environnement mécanique pour les cellules. Il serait toutefois excessif d’affirmer qu’elle déclenche nécessairement une réponse biologique favorable.
La réponse dépend notamment :
- intensité de la contrainte ;
- surface de répartition ;
- durée de la charge ;
- cisaillement ;
- déformabilité des tissus ;
- capacité de repositionnement ;
- état biologique du tissu.
Un environnement spatial et temporel
Du point de vue de la mécanobiologie, une assise ne se caractérise donc pas seulement par une pression moyenne. Elle définit un environnement mécanique spatial et temporel, qui inclut notamment :
- répartition spatiale des pressions ;
- gradients de compression dans l’épaisseur des tissus ;
- cisaillement ;
- durée de maintien ;
- répétition des charges ;
- capacité de repositionnement ;
- déplacement temporel des zones les plus sollicitées ;
- alternance entre charge et moindre charge.
Les études sur les sièges et les pressions d’interface montrent que la conception du support peut modifier la distribution des charges, ainsi que certains indicateurs locaux de perfusion (Makhsous et al., 2007, 2012). Elles ne démontrent cependant pas directement qu’une assise dynamique active une mécanotransduction bénéfique, ou améliore le remodelage cellulaire.
Une assise modifie l’environnement mécanique des tissus. Elle peut ainsi influencer les déformations, les contraintes et les signaux mécaniques reçus par les cellules, sans que cela permette de prédire à lui seul une réponse biologique favorable.
13. Ce qu’il faut retenir
Une contrainte mécanique devient un signal biologique lorsqu’elle est détectée par une structure mécanosensible, puis convertie en une réponse intracellulaire.
En résumé, les principales étapes sont :
- déformation de la matrice ou de la membrane ;
- transmission par les intégrines et les adhérences ;
- réorganisation du cytosquelette ;
- ouverture éventuelle de canaux ioniques, notamment PIEZO1 et PIEZO2 ;
- activation de voies biochimiques telles que FAK/Src, RhoA ou MAPK/ERK ;
- transmission mécanique vers le noyau, ou translocation de régulateurs comme YAP et TAZ ;
- modification des pores nucléaires ou de la chromatine ;
- adaptation de l’activité cellulaire.
La mécanotransduction n’est pas une réaction automatique à toute pression. C’est une conversion qui dépend du type cellulaire, de la structure du tissu, de l’intensité, de la durée et de la répétition de la contrainte.
Bilan de l’article
Plusieurs systèmes permettent aux cellules de détecter les forces mécaniques. En premier lieu, les intégrines relient la matrice extracellulaire au cytosquelette. Certains canaux mécanosensibles, notamment PIEZO1 et PIEZO2, convertissent des déformations membranaires en signaux ioniques. Les jonctions transmettent par ailleurs les forces entre les cellules. Le complexe LINC relie enfin le cytosquelette à l’enveloppe nucléaire.
Entre ces structures et l’expression des gènes, des voies biochimiques comme FAK/Src, RhoA ou YAP/TAZ assurent la conversion du signal. La contrainte peut ainsi modifier la forme de la cellule, la tension du cytosquelette, la structure du noyau, l’organisation de la chromatine et l’expression de certains gènes.
Cette réponse dépend toutefois de la dose mécanique et du contexte biologique. Autrement dit, une contrainte modérée et adaptée peut participer à une réponse d’adaptation, tandis qu’une charge excessive, répétée ou prolongée peut contribuer à une réponse défavorable.
En position assise, l’enjeu n’est donc pas d’attribuer à toute pression une action biologique précise. Il consiste plutôt à comprendre que la géométrie, la distribution, la durée et la variabilité des contraintes définissent l’environnement mécanique auquel les cellules sont exposées.
Références scientifiques
Mécanotransduction : principes généraux
- Humphrey, J. D., Dufresne, E. R., & Schwartz, M. A. (2014). Mechanotransduction and extracellular matrix homeostasis. Nature Reviews Molecular Cell Biology, 15(12), 802–812. https://doi.org/10.1038/nrm3896
- Jaalouk, D. E., & Lammerding, J. (2009). Mechanotransduction gone awry. Nature Reviews Molecular Cell Biology, 10(1), 63–73.
- Wang, J. H.-C., & Thampatty, B. P. (2006). An introductory review of cell mechanobiology. Biomechanics and Modeling in Mechanobiology, 5(1), 1–16.
Adhérences, cytosquelette et canaux mécanosensibles
- Ross, T. D., Coon, B. G., Yun, S., et al. (2013). Integrins in mechanotransduction. Current Opinion in Cell Biology, 25(5), 613–618. https://doi.org/10.1016/j.ceb.2013.05.006
- Sun, Z., Guo, S. S., & Fässler, R. (2016). Integrin-mediated mechanotransduction. Journal of Cell Biology, 215(4), 445–456.
- Xiao, B. (2024). Mechanisms of mechanotransduction and physiological roles of PIEZO channels. Nature Reviews Molecular Cell Biology, 25(11), 886–903. https://doi.org/10.1038/s41580-024-00773-5
Noyau, voies de signalisation et remodelage
- Echarri, A. (2022). A multisensory network drives nuclear mechanoadaptation. Biomolecules, 12(3), 404. https://doi.org/10.3390/biom12030404
- Kirby, T. J., & Lammerding, J. (2018). Emerging views of the nucleus as a cellular mechanosensor. Nature Cell Biology, 20(4), 373–381. https://doi.org/10.1038/s41556-018-0038-y
- Panciera, T., Azzolin, L., Cordenonsi, M., & Piccolo, S. (2017). Mechanobiology of YAP and TAZ in physiology and disease. Nature Reviews Molecular Cell Biology, 18(12), 758–770. https://doi.org/10.1038/nrm.2017.87
- Uhler, C., & Shivashankar, G. V. (2017). Regulation of genome organization and gene expression by nuclear mechanotransduction. Nature Reviews Molecular Cell Biology, 18(11), 717–727. https://doi.org/10.1038/nrm.2017.101
Position assise et pressions d’interface
- Makhsous, M., Priebe, M., Bankard, J., et al. (2007). Measuring tissue perfusion during pressure relief maneuvers: insights into preventing pressure ulcers. The Journal of Spinal Cord Medicine, 30(5), 497–507.
- Makhsous, M., Lin, F., Hanawalt, D., Kruger, S. L., & LaMantia, A. (2012). The effect of chair designs on sitting pressure distribution and tissue perfusion. Human Factors, 54(6), 1066–1074. https://doi.org/10.1177/0018720812457681