


1. Le corps comme système ouvert
Concrètement, un système ouvert désigne, en biologie, une organisation qui échange en permanence avec son environnement. Cet échange porte à la fois sur la matière et sur l’énergie. À l’inverse, un système fermé n’échangerait que de l’énergie, et un système isolé n’échangerait rien du tout. De fait, le corps vivant correspond au premier cas.
Ainsi, dès 1968, le biologiste Ludwig von Bertalanffy a formalisé cette idée dans sa théorie générale des systèmes. En effet, un organisme vivant ne peut être compris comme un objet statique. Il se maintient précisément en restant ouvert aux échanges avec son milieu (Bertalanffy, 1968). En réalité, cette ouverture n’est pas une option parmi d’autres : elle est la condition même de son existence.
Ce dossier retient une lecture large de ces échanges : matière, énergie, mais aussi information. Ici, ce dernier terme est entendu au sens biologique. Il désigne notamment tout signal susceptible de modifier l’état ou l’activité d’un système vivant (Hoke et al., 2021). Par ailleurs, les flux sensoriels et nerveux proprement dits feront l’objet d’un sous-dossier distinct.
En réalité, décrire le corps uniquement à travers son anatomie — ses os, ses muscles, ses articulations — ne suffit pas. C’est en somme comme photographier un fleuve sans montrer l’eau qui coule. Cependant, la forme reste identifiable, tandis qu’une partie des constituants qui l’entretiennent est continuellement transférée, transformée ou renouvelée.
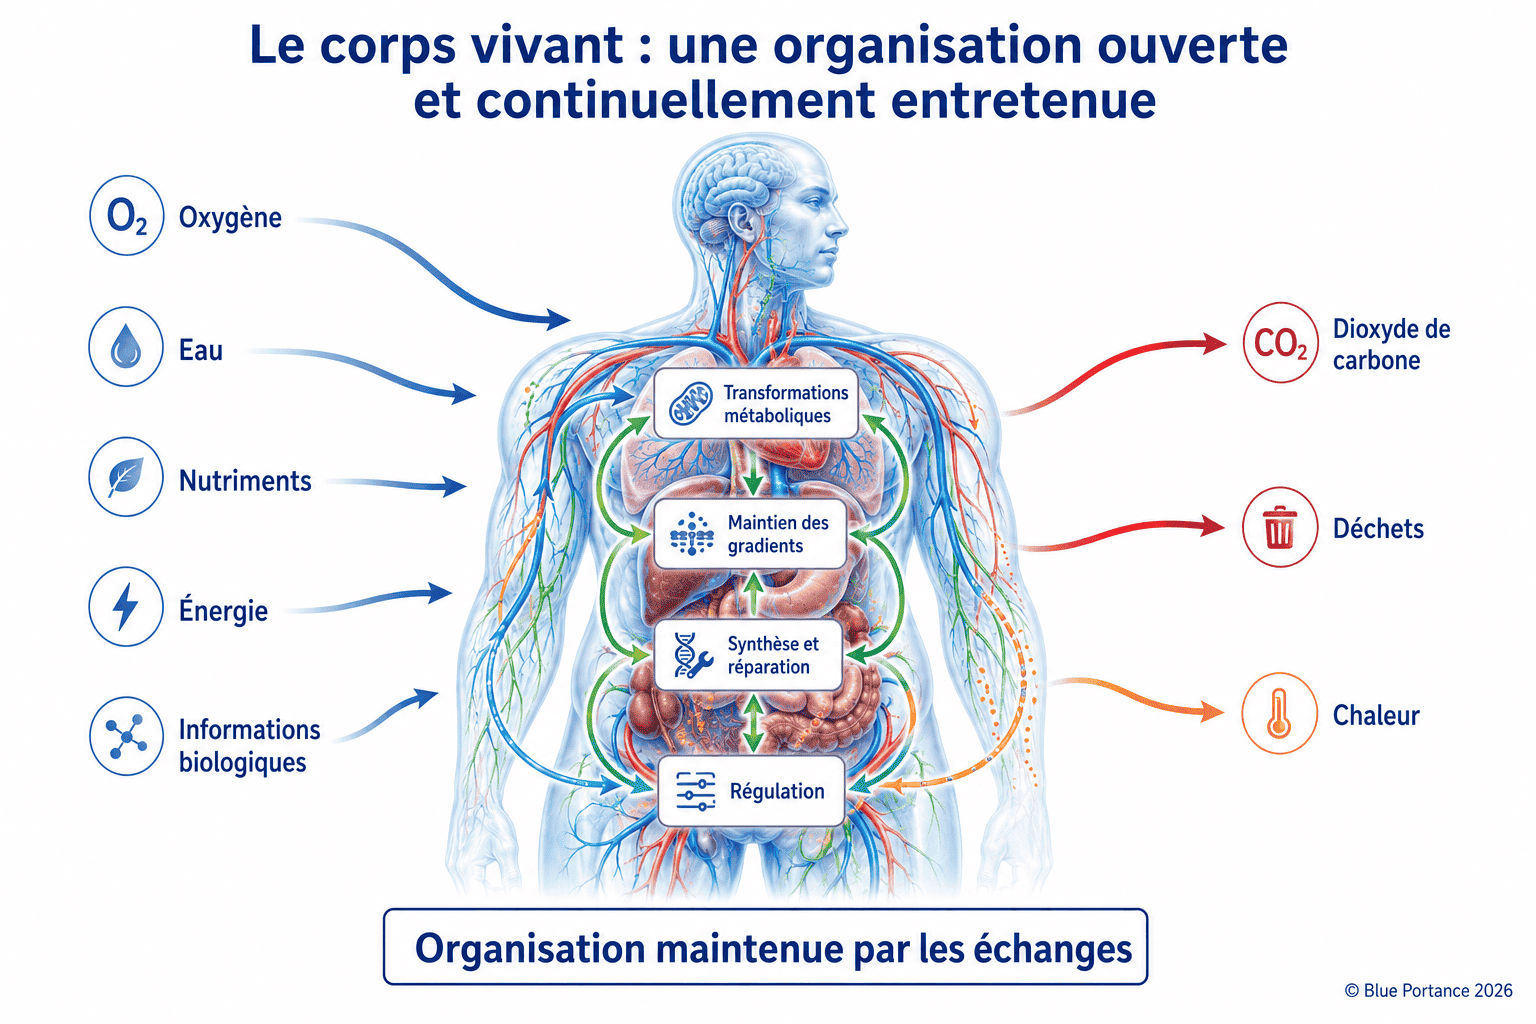
Dès 1944, dans What Is Life?, le physicien Erwin Schrödinger a proposé une idée devenue classique. Un organisme vivant, selon lui, maintient son organisation grâce à des échanges continus avec son environnement. Ces échanges portent à la fois sur la matière et sur l’énergie (Schrödinger, 1944). Un système isolé évolue au contraire spontanément vers un état d’équilibre thermodynamique dans lequel les gradients exploitables s’atténuent.
2. Entrées, transformations et sorties : les échanges qui soutiennent le métabolisme
Concrètement, cet échange se traduit par trois mouvements simultanés. D’abord, le corps reçoit de la matière et de l’énergie — oxygène, eau, nutriments. Puis, il les transforme par des réactions métaboliques successives. Il évacue ensuite les produits de cette transformation — dioxyde de carbone, chaleur, déchets azotés.
En particulier, ces transformations reposent sur l’adénosine triphosphate, ou ATP. De fait, cette molécule constitue la principale forme immédiatement utilisable d’énergie chimique pour de nombreuses fonctions cellulaires. Notamment, cette molécule alimente le maintien des gradients ioniques de part et d’autre des membranes. En outre, elle intervient dans les transports actifs et la contraction musculaire. Elle soutient également la signalisation, ainsi que la synthèse et la réparation des constituants tissulaires (Nelson & Cox, 2021).
Le métabolisme désigne ainsi l’ensemble organisé des réactions qui transforment matière et énergie au sein de l’organisme. Concrètement, cette transformation s’opère de l’échelle moléculaire jusqu’à celle des tissus. Il se compose classiquement de deux volets complémentaires. Le catabolisme dégrade les molécules complexes pour en libérer l’énergie. À l’inverse, l’anabolisme utilise cette énergie pour synthétiser les constituants nécessaires à la croissance et au renouvellement des tissus. En bref, sans cette activité métabolique, l’organisme ne pourrait maintenir durablement ses gradients, ses fonctions cellulaires et son organisation physiologique.
Ce métabolisme n’est cependant pas homogène : son intensité varie fortement d’un organe à l’autre. Rapportée au kilogramme de tissu, elle est, par exemple, bien plus élevée dans le cœur et les reins que dans le muscle squelettique au repos. Le tissu adipeux, à l’inverse, consomme comparativement très peu d’énergie (Wang et al., 2010). Cette hétérogénéité métabolique annonce, à l’échelle des organes, la diversité de rythmes que l’on retrouve également à l’échelle moléculaire et cellulaire. Le chapitre suivant développera cette diversité.
3. Le renouvellement permanent des constituants
De fait, ce flux ne se limite pas à l’apport d’énergie. En effet, il concerne aussi le renouvellement matériel des constituants du corps eux-mêmes. Les protéines, les lipides membranaires et même certains composants de la matrice extracellulaire sont continuellement dégradés puis resynthétisés. Ces rythmes de renouvellement varient toutefois fortement d’une molécule et d’un tissu à l’autre.
Trois niveaux de renouvellement emboîtés
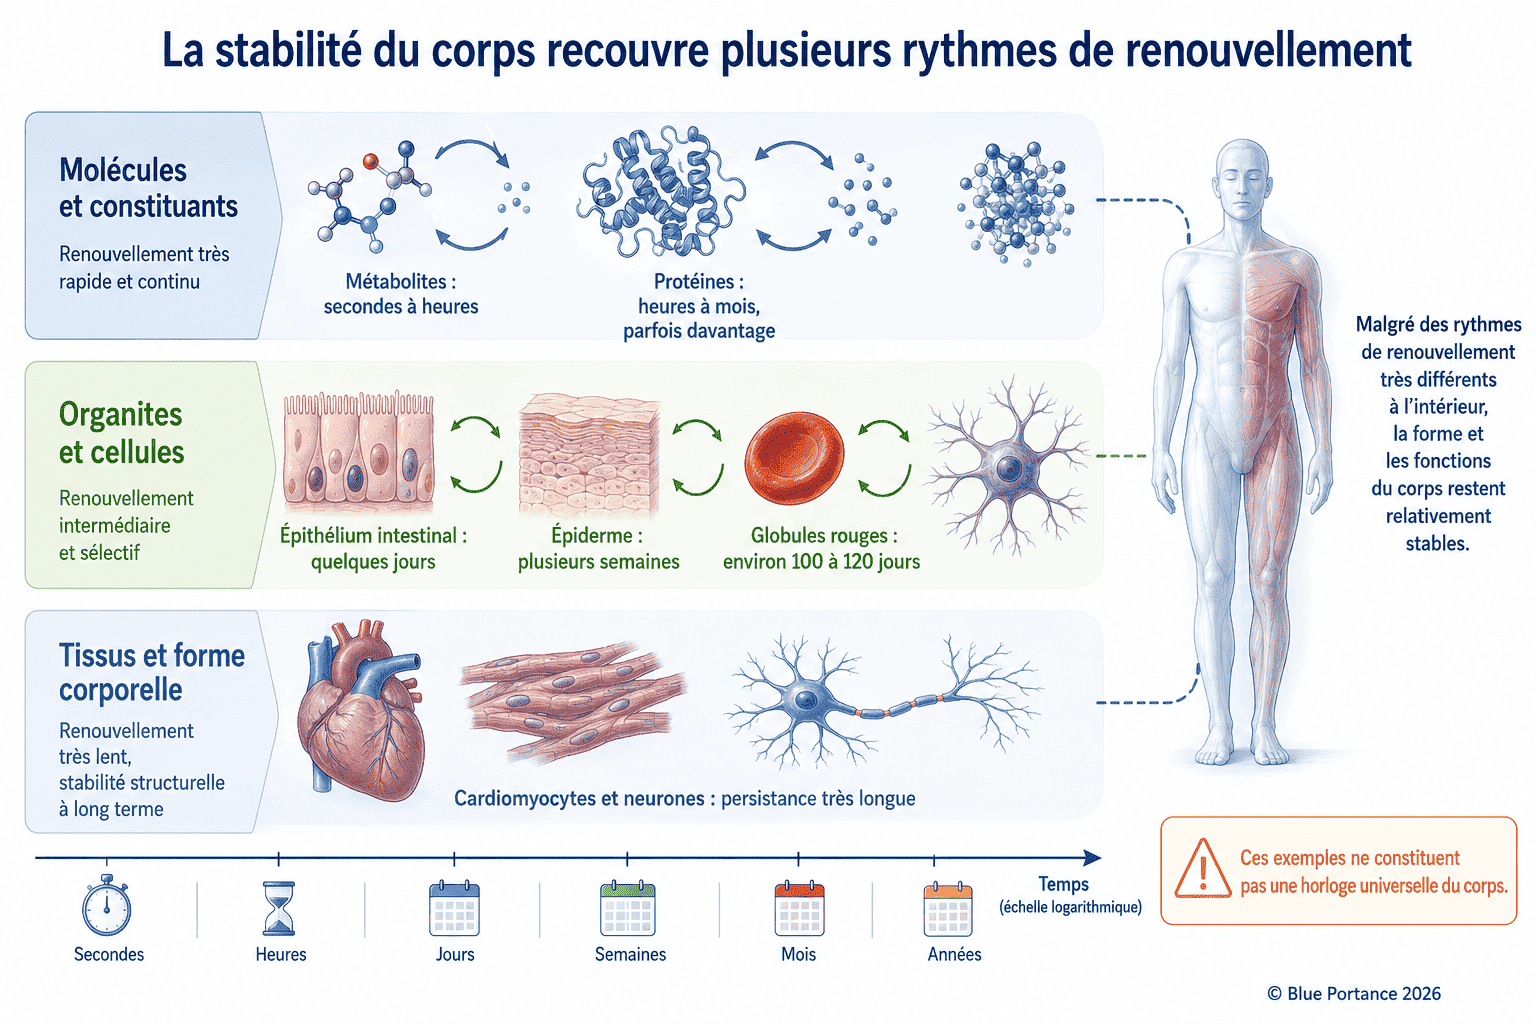
Ce renouvellement s’organise en outre à plusieurs niveaux emboîtés, qu’il convient de distinguer. Par exemple, une molécule peut être dégradée puis resynthétisée sans que l’organite auquel elle appartient cesse de fonctionner. De même, un organite peut lui-même être renouvelé sans que la cellule qui l’abrite disparaisse. Une cellule, quant à elle, peut être remplacée en quelques jours selon le tissu. Elle peut, au contraire, persister toute la vie d’un individu. Néanmoins, cela ne présume en rien du rythme de renouvellement de ses propres molécules internes. La stabilité macroscopique d’un tissu — celle que l’on observe à l’œil nu — ne renseigne donc pas sur la persistance de ses cellules. Elle ne renseigne pas non plus sur celle de leurs constituants moléculaires. Ce sont trois échelles distinctes, qui évoluent selon des rythmes propres.
Concrètement, ces trois échelles peuvent être illustrées par quelques exemples courants. Les globules rouges circulants sont renouvelés en une centaine de jours environ. Puis, ils sont éliminés et remplacés par de nouvelles cellules produites par la moelle osseuse. L’épithélium qui tapisse l’intestin se renouvelle en quelques jours à peine. Il s’agit ainsi de l’un des tissus les plus rapidement remplacés de l’organisme. À l’inverse, la couche superficielle de l’épiderme met plusieurs semaines à se renouveler complètement (Sender & Milo, 2021). Autrement dit, ces rythmes cellulaires très différents ne préjugent en rien du rythme de renouvellement moléculaire. Cela vaut pour chaque tissu, quelles que soient ses cellules.
Des vitesses de renouvellement très inégales
Ces rythmes s’étagent en effet sur des échelles de temps très différentes. Ainsi, les molécules énergétiques et certains métabolites se renouvellent en quelques secondes à quelques heures. De nombreuses protéines cellulaires ont, quant à elles, une durée de vie variable. Concrètement, cette durée va de quelques heures à plusieurs mois selon le tissu. Les cellules sanguines et les cellules épithéliales sont remplacées en quelques jours à quelques mois. À l’inverse, certains composants de la matrice extracellulaire persistent plusieurs mois, voire plusieurs années.
Cette hétérogénéité invite à corriger une idée reçue. Contrairement à une image parfois répandue, l’organisme ne renouvelle pas la totalité de sa matière à intervalles réguliers. Certaines structures sont au contraire remarquablement stables. Ainsi, certaines protéines du noyau du cristallin de l’œil, appelées cristallines, sont extrêmement stables. En effet, elles ne présentent pratiquement aucun renouvellement détectable après leur formation (Lynnerup et al., 2008). De même, une étude a porté notamment sur le cortex occipital humain. Certains neurones y présentaient un âge comparable à celui de l’individu. Les cellules non neuronales environnantes, en revanche, étaient renouvelées (Spalding et al., 2005). Dans le cerveau de rat, des protéines structurales présentaient une durée de vie exceptionnellement longue. Il s’agissait notamment de certains composants des complexes du pore nucléaire et de certaines histones. Elles conservaient toutefois un échange lent mais mesurable (Toyama et al., 2013).
Ce renouvellement permanent, mais hétérogène, explique un paradoxe apparent. Une structure corporelle peut rester visuellement stable pendant des années. Pourtant, une part importante de ses constituants a été transformée ou remplacée entre-temps. Ces rythmes varient beaucoup d’une molécule et d’un tissu à l’autre. La forme persiste, tandis qu’une partie de sa matière est continuellement transférée, transformée ou renouvelée.
Renouvellement moléculaire et persistance cellulaire : l’exemple musculaire
Le muscle squelettique illustre bien cette distinction entre les échelles. Une grande partie de ses fibres sont des cellules post-mitotiques. En effet, ces cellules persistent pendant des années, voire toute la vie de l’individu, sans division cellulaire. Cette persistance cellulaire ne signifie pourtant pas une stabilité moléculaire. Chez la souris, des travaux de protéomique quantitative ont mesuré des demi-vies protéiques très hétérogènes. Ces mesures portaient sur le tissu musculaire squelettique. Par exemple, certaines protéines se renouvelaient en quelques heures, d’autres en plusieurs mois (Rolfs et al., 2021). Ce constat, obtenu chez l’animal, illustre le principe général plutôt qu’une mesure directe chez l’humain.
Le muscle cardiaque offre un exemple comparable, mais plus nuancé encore. Contrairement à une idée longtemps répandue, les cardiomyocytes humains se renouvellent bel et bien, quoique très lentement. Leur taux de renouvellement annuel décline avec l’âge. Concrètement, il passe d’environ 1 % par an vers 25 ans, à moins de 0,5 % vers 75 ans. Moins de la moitié des cardiomyocytes d’un individu sont ainsi remplacés au cours d’une vie entière (Bergmann et al., 2009). Une cellule musculaire durable peut ainsi renouveler une grande partie de son contenu moléculaire, voire, très lentement, se renouveler elle-même. Cela ne remet pas en cause la stabilité apparente du tissu qu’elle compose.
4. Structure anatomique et processus vivant : une distinction essentielle
Cette distinction entre structure et processus est centrale pour ce dossier. Ainsi, une structure anatomique décrit une forme à un instant donné — un os, un muscle, une articulation. À l’inverse, un processus vivant décrit, lui, ce qui se passe continuellement à l’intérieur et autour de cette forme. Plus précisément, les échanges, les transformations et le renouvellement en constituent la trame.
Selon un cadre théorique de l’autonomie biologique, l’organisme se comporte comme un système ouvert et auto-entretenu. Il produit et maintient ses propres composants au fil du temps. Cet organisme ne fonctionne donc pas comme un assemblage figé de pièces (Moreno & Mossio, 2015). Une anatomie décrit une géométrie ; la physiologie décrit une activité. Les deux lectures sont nécessaires, mais elles ne se substituent pas l’une à l’autre.
5. L’homéostasie : un équilibre dynamique, pas une immobilité
D’ailleurs, c’est le physiologiste Walter Cannon qui a introduit, en 1929, le terme d’homéostasie. Il désignait ainsi la capacité de l’organisme à maintenir la constance relative de son milieu intérieur — température, pH, concentrations diverses. Cette constance persiste malgré les variations de son environnement (Cannon, 1929).
Néanmoins, cette constance ne doit pas être confondue avec une absence de mouvement. Elle résulte au contraire d’une régulation active et continue. En effet, cette régulation ajuste en permanence les entrées et les sorties pour compenser les perturbations. Par conséquent, l’homéostasie est un équilibre entretenu, non un état figé. Elle se distingue ainsi du renouvellement matériel des tissus (chapitre 3), et de leur adaptation aux contraintes mécaniques, qui répondent à des logiques et à des échelles de temps différentes.
Ainsi, lorsqu’une variable s’écarte de sa plage habituelle, des mécanismes correcteurs s’activent pour la ramener vers cette plage. Ces mécanismes comprennent notamment la vasodilatation, les frissons et les sécrétions hormonales. Concrètement, cette régulation s’observe par exemple dans le maintien de la température corporelle ou de la glycémie. L’homéostasie ne fige donc aucune valeur. Elle maintient plutôt des variables dans des limites compatibles avec le fonctionnement de l’organisme, par une activité corrective constante.
6. Ce que cela change pour la posture assise
En effet, la physiologie établit solidement un point : le vivant se maintient par des échanges continus, non par l’immobilité. Ce constat général n’établit pas, en revanche, qu’un dispositif d’assise particulier améliorerait par lui-même le fonctionnement cellulaire. Le lien entre les deux reste conceptuel. Il sera précisé chapitre après chapitre. Ce dossier abordera, à mesure de sa progression, la matrice extracellulaire, les contraintes mécaniques puis la position assise elle-même.
Ainsi, ce premier chapitre pose surtout un principe de lecture. De fait, le maintien d’une forme ou d’une posture ne signifie pas l’absence d’activité interne. Une assise ne devrait donc pas être évaluée uniquement selon sa capacité à maintenir un alignement prédéfini. Il faut également considérer les conditions mécaniques qu’elle maintient dans la durée. Par ailleurs, il faut aussi tenir compte de la possibilité laissée à la personne de modifier spontanément sa posture et ses appuis.
Les chapitres suivants détaillent ce que ces échanges impliquent concrètement : le milieu intérieur des cellules, puis la matrice extracellulaire. Ils exposent également les mécanismes physiques — diffusion, osmose, filtration — qui permettent les transferts de matière au sein des tissus.
En définitive, le corps vivant paraît stable parce qu’il maintient son organisation, non parce qu’il resterait immobile. Cette organisation dépend d’échanges constants de matière et d’énergie. En effet, ces échanges sont entretenus à des rythmes hétérogènes, selon les molécules, les cellules et les tissus concernés. Ainsi, les articles suivants de ce dossier reprendront chacun l’un de ces mécanismes pour en préciser le fonctionnement. Ils en préciseront, in fine, les implications pour la position assise.
Références scientifiques
Système ouvert, métabolisme et homéostasie
- Bertalanffy, L. von. (1968). General System Theory: Foundations, Development, Applications. New York: George Braziller.
- Cannon, W. B. (1929). Organization for physiological homeostasis. Physiological Reviews, 9(3), 399–431.
- Hoke, K. L., Zimmer, S. L., Roddy, A. B., Ondrechen, M. J., Williamson, C. E., & Buan, N. R. (2021). Reintegrating biology through the nexus of energy, information, and matter. Integrative and Comparative Biology, 61(6), 2082–2094.
- Moreno, A., & Mossio, M. (2015). Biological Autonomy: A Philosophical and Theoretical Enquiry. Dordrecht: Springer.
- Nelson, D. L., & Cox, M. M. (2021). Lehninger Principles of Biochemistry (8th ed.). New York: W. H. Freeman.
- Schrödinger, E. (1944). What Is Life? The Physical Aspect of the Living Cell. Cambridge: Cambridge University Press.
- Wang, Z., Ying, Z., Bosy-Westphal, A., Zhang, J., Schautz, B., Later, W., Heymsfield, S. B., & Müller, M. J. (2010). Specific metabolic rates of major organs and tissues across adulthood: evaluation by mechanistic model of resting energy expenditure. The American Journal of Clinical Nutrition, 92(6), 1369–1377.
Renouvellement et temporalités biologiques
- Bergmann, O., Bhardwaj, R. D., Bernard, S., Zdunek, S., Barnabé-Heider, F., Walsh, S., Zupicich, J., Alkass, K., Buchholz, B. A., Druid, H., Jovinge, S., & Frisén, J. (2009). Evidence for cardiomyocyte renewal in humans. Science, 324(5923), 98–102.
- Lynnerup, N., Kjeldsen, H., Heegaard, S., Jacobsen, C., & Heinemeier, J. (2008). Radiocarbon dating of the human eye lens crystallines reveal proteins without carbon turnover throughout life. PLoS ONE, 3(1), e1529.
- Rolfs, Z., Frey, B. L., Shi, X., Kawai, Y., Smith, L. M., & Welham, N. V. (2021). An atlas of protein turnover rates in mouse tissues. Nature Communications, 12, 6778.
- Sender, R., & Milo, R. (2021). The distribution of cellular turnover in the human body. Nature Medicine, 27(1), 45–48.
- Spalding, K. L., Bhardwaj, R. D., Buchholz, B. A., Druid, H., & Frisén, J. (2005). Retrospective birth dating of cells in humans. Cell, 122(1), 133–143.
- Toyama, B. H., Arrojo e Drigo, R., Lev-Ram, V., Ramachandra, R., Deerinck, T. J., Lechene, C., Ellisman, M. H., & Hetzer, M. W. (2013). Identification of long-lived proteins reveals exceptional stability of essential cellular structures. Cell, 154(5), 971–982.